
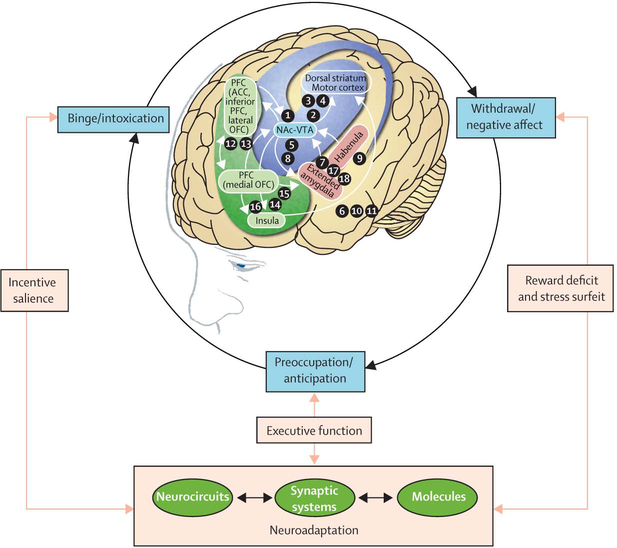
Współczesna neurobiologia definiuje uzależnienie jako przewlekłe, nawracające zaburzenie motywacji i samoregulacji, w którym dochodzi do głębokiej dysregulacji specyficznych szlaków mózgowych. Zmiany te napędzają cykliczne przejście od impulsywnego poszukiwania nagrody do kompulsywnego przyjmowania substancji w celu złagodzenia negatywnych stanów emocjonalnych. Zrozumienie dynamiki trzech faz tego cyklu oraz powiązanych z nimi struktur mózgowych stanowi klucz do naukowego ujęcia natury nałogu.
Ramy pojęciowe i trójfazowy model uzależnienia
Przez dekady uzależnienie bywało postrzegane w kategoriach słabości charakteru lub deficytu moralnego. Jednak postępy w badaniach laboratoryjnych oraz rozwój technik neuroobrazowania, takich jak pozytonowa tomografia emisyjna (PET) czy rezonans magnetyczny (MRI), zweryfikowały ten pogląd. Obecnie uzależnienie jest klasyfikowane w nozologii medycznej (m.in. w DSM-5 jako zaburzenia używania substancji – od postaci łagodnej po ciężką) jako przewlekła choroba mózgu wykazująca tendencję do nawrotów, porównywalna pod względem podatności na nawroty i zmienności reakcji biologicznych do schorzeń takich jak cukrzyca, astma czy nadciśnienie tętnicze.
Centralnym punktem odniesienia w opisie neurobiologicznym stał się model trójfazowego, powtarzającego się cyklu uzależnienia. Obejmuje on fazę intoksykacji lub nadużywania (binge/intoxication), fazę odstawienia i negatywnego afektu (withdrawal/negative affect) oraz fazę zaabsorbowania i przewidywania, określaną również jako faza głodu substancji (preoccupation/anticipation). Każda z tych faz odzwierciedla dysregulację konkretnych domen funkcjonalnych – odpowiednio: wyrazistości motywacyjnej i nawyków, dysforii oraz przeciążenia stresem, a także osłabionej kontroli wykonawczej. Zaburzenia te są powiązane z anatomicznymi sieciami obejmującymi zwoje podstawy, rozszerzoną ciałowatą (extended amygdala) oraz korę przedczołową.
W przebiegu rozwoju uzależnienia dochodzi do ewolucji zachowania: początkowa impulsywność, definiowana jako skłonność do szybkich, nieplanowanych reakcji nastawionych na gratyfikację i wzmocnienie pozytywne, stopniowo ustępuje miejsca kompulsywności. Kompulsywność charakteryzuje się powtarzalnymi, sztywnymi działaniami podejmowanymi w celu zredukowania napięcia, lęku i dysforii, co stanowi przejście do mechanizmu wzmocnienia negatywnego.
Faza intoksykacji: wyrazistość motywacyjna i formowanie nawyków
W fazie intoksykacji (binge/intoxication) zasadniczą rolę odgrywają zwoje podstawy oraz wstępujący mezokortykolimbiczny układ dopaminergiczny, łączący pole brzuszne nakrywki (VTA) z jądrem półleżącym (nucleus accumbens). W warunkach fizjologicznych układy te odpowiadają za detekcję naturalnych bodźców nagradzających, niezbędnych do przetrwania gatunku, takich jak pokarm czy zachowania seksualne. Substancje psychoaktywne gwałtownie stymulują te szlaki, wywołując wyrzut dopaminy oraz peptydów opioidowych w prążkowiu brzusznym.
Badania obrazowe u ludzi wykazały, że szybki i stromy wzrost stężenia dopaminy koreluje z subiektywnym odczuciem intoksykacji („haju”). Taki nagły skok aktywuje receptory dopaminowe D1 o niskim powinowactwie, co jest konieczne do wystąpienia efektu nagradzającego i zapoczątkowania warunkowania. Z kolei stymulacja receptorów D2 o wysokim powinowactwie okazuje się niewystarczająca do wywołania nagrody, a w pewnych warunkach może wręcz ograniczać to działanie.
Powtarzana ekspozycja na substancję przekształca pierwotnie obojętne bodźce środowiskowe w bodźce warunkowe. Zjawisko to leży u podstaw wyrazistości motywacyjnej (incentive salience). Neurony dopaminowe śródmózgowia, które początkowo reagują na samą substancję, z czasem przestają odpalać w odpowiedzi na przewidywalną nagrodę, a zaczynają reagować na bodźce ją zapowiadające. Bodźce te zyskują autonomiczną zdolność wywoływania motywacji do poszukiwania środka.
Dodatkowo angażowane są pętle prążkowiowo-gałkowo-wzgórzowo-korowe. Początkowa aktywacja prążkowia brzusznego stopniowo przenosi kontrolę zachowania na prążkowie grzbietowe. Przejście to odpowiada za przejście od działań ukierunkowanych na cel do automatycznych nawyków i sztywnych reakcji poszukiwania substancji. Kluczową rolę plastyczną odgrywają tu połączenia glutaminianergiczne z kory przedczołowej i ciała migdałowatego do VTA i jądra półleżącego, działające poprzez receptory NMDA i AMPA, a także układy GABA-ergiczne, serotoninowe i cholinergiczne.
Faza odstawienia i afektu negatywnego: adaptacje wewnątrzukładowe i układ anty-nagrody
Faza odstawienia (withdrawal/negative affect) charakteryzuje się pojawieniem się przewlekłej drażliwości, bólu emocjonalnego, złego samopoczucia, dysforii, aleksytymii oraz anhedonii, czyli utraty wrażliwości na naturalne źródła przyjemności. W modelach zwierzęcych stan ten manifestuje się podwyższeniem progu nagrody w mózgu, co chronologicznie poprzedza eskalację ilości przyjmowanej substancji.
Podłożem tych objawów są dwa komplementarne zjawiska neurobiologiczne: adaptacje wewnątrzukładowe (within-system neuroadaptations) oraz adaptacje międzyukładowe (between-system neuroadaptations). Zmiany wewnątrzukładowe to procesy kompensacyjne w samym układzie nagrody, zmierzające do zrównoważenia działania substancji. Gdy jej brakuje, ujawnia się deficyt: dochodzi do spadku transmisji dopaminergicznej i serotoninergicznej w jądrze półleżącym. U osób uzależnionych w fazie abstynencji badania PET rejestrują spadek odpowiedzi dopaminowej w prążkowiu nawet o 50–80% w porównaniu z grupą kontrolną, co klinicznie odpowiada spłaszczeniu afektu i obniżonemu odczuwaniu nagrody.
Z kolei adaptacje międzyukładowe polegają na rekrutacji struktur stresowych i tzw. układu anty-nagrody (anti-reward system). Przewlekłe pobudzanie układu nagrody wyzwala procesy przeciwstawne w obrębie rozszerzonego ciała migdałowatego (w tym jądra środkowego ciała migdałowatego i jądra łożyskowego pasma krańcowego – BNST) oraz uzdeczki (habenula). Kluczowymi przekaźnikami stresu stają się czynnik uwalniający kortykotropinę (CRF), dynorfina oraz noradrenalina. Dynorfina, działając na receptory opioidowe kappa w powłoce jądra półleżącego, hamuje uwalnianie dopaminy, pogłębiając stan awersyjny. W badaniach przedklinicznych antagoniści receptorów CRF oraz receptorów kappa blokują nadmierne, kompulsywne przyjmowanie substancji oraz reakcje lękowe w fazie odstawienia.
Istotną rolę w kodowaniu stanów awersyjnych odgrywa również boczna uzdeczka, która moduluje hamowanie neuronów dopaminowych VTA przy braku oczekiwanej nagrody. Ponadto dochodzi do osłabienia działania endogennych układów buforujących stres, takich jak neuropeptyd Y (NPY), nocyceptyna oraz układ endokannabinoidowy (badania obrazowe wskazują na redukcję dostępności receptorów CB1 u osób nadużywających kanabinoidów i alkoholu). Wyczerpanie buforów i nadaktywność układu stresu tworzą silną motywację do ponownego przyjęcia substancji na drodze wzmocnienia negatywnego.
Faza zaabsorbowania i przewidywania: dysfunkcja kory przedczołowej i głód substancji
Faza zaabsorbowania i przewidywania (preoccupation/anticipation) definiuje uzależnienie jako przewlekłe schorzenie nawrotowe. Obejmuje ona okres po ustąpieniu ostrych objawów odstawiennych, w którym jednostka doświadcza intensywnego pragnienia substancji (craving) oraz trudności w powstrzymaniu się od wznowienia jej przyjmowania. Choć subiektywny głód bywa trudny do jednoznacznego zmierzenia i nie zawsze idealnie koreluje z nawrotem, faza ta stanowi główny punkt odniesienia dla poszukiwania mechanizmów nawrotu.
Wznowienie poszukiwania substancji może zostać wywołane przez trzy główne czynniki: ponowny kontakt z samą substancją, kontakt ze skojarzonymi z nią bodźcami (wskazówkami) lub działanie stresorów. Badania na modelach gryzoni wskazują, że wznowienie wywołane dawką substancji lub wskazówkami jest zależne od projekcji glutaminianergicznych łączących korę przedczołową (wstępną/prelimbiczną) oraz podstawno-boczne ciało migdałowate z jądrem półleżącym. Z kolei nawrót indukowany stresem angażuje CRF i noradrenalinę w rozszerzonym ciele migdałowatym i VTA.
U ludzi ekspozycja na bodźce wywołujące głód aktywuje specyficzne obszary kory przedczołowej: grzbietowo-boczną korę przedczołową, przedni zakręt obręczy oraz przyśrodkową korę oczodołowo-czołową, czemu towarzyszy wyrzut dopaminy i peptydów opioidowych. Jednocześnie w stanie spoczynkowym obserwuje się hipoaktywność tych struktur oraz obniżoną dostępność receptorów D2 w prążkowiu, co bezpośrednio przekłada się na deficyty funkcji wykonawczych: osłabioną elastyczność poznawczą, upośledzenie pamięci roboczej i brak zdolności hamowania nieadaptacyjnych zachowań.
Szczególne znaczenie przypisuje się również wyspie (insula), która odpowiada za interocepcję – integrację sygnałów wegetatywnych i trzewnych ze stanami emocjonalnymi. Zapewnia ona świadome odczuwanie pragnienia substancji. Potwierdzają to obserwacje kliniczne pacjentów z uszkodzeniem wyspy, u których dochodziło do natychmiastowego zaprzestania palenia tytoniu bez doświadczania głodu czy nawrotów. Współdziałanie nadaktywnego systemu dążenia (system „Go”) z osłabionym systemem hamowania korowego (system „Stop”) wyjaśnia, dlaczego ekspozycja na bodziec lub stres z tak dużą siłą prowadzi do załamania samokontroli.
Co z tego wynika?
Zrozumienie neurobiologicznych mechanizmów uzależnienia prowadzi do istotnych wniosków wykraczających poza laboratoryjny opis struktur mózgowych:
* **Biologiczna podstawa trudności w utrzymaniu abstynencji:** Zmiany plastyczne wywołane przez substancje psychoaktywne cechują się dużą trwałością i utrzymują się długo po odstawieniu środka, co sprawia, że podatność na nawrót pozostaje podwyższona przez wiele lat (według danych epidemiologicznych ponad 60% osób leczonych z powodu uzależnień doświadcza nawrotu w ciągu pierwszego roku od zakończenia terapii).
* **Zmiana paradygmatu motywacji:** Przejście od poszukiwania przyjemności (wzmocnienie pozytywne) do ucieczki przed dysforią i stresem wywołanym odstawieniem (wzmocnienie negatywne i układ anty-nagrody) wyjaśnia, dlaczego przymus sięgania po substancję rośnie, nawet gdy jej farmakologiczne działanie euforyzujące ulega osłabieniu.
* **Potencjał celowanych farmakoterapii:** Odkrycie specyficznych szlaków neuroprzekaźnikowych – m.in. układu CRF, receptorów kappa dla dynorfiny, transmisji glutaminianergicznej czy neuropeptydu Y – wyznacza konkretne cele dla nowych leków wspomagających leczenie i zapobiegających nawrotom.
* **Konieczność wsparcia funkcji wykonawczych:** Uszkodzenie kory przedczołowej i spadek dostępności receptorów D2 ograniczają zdolność do samodzielnego hamowania impulsów, co dowodzi, że interwencje terapeutyczne muszą uwzględniać biologicznie uwarunkowane ograniczenia poznawcze pacjenta.
Ograniczenia i kontekst badania
Przedstawione koncepcje opierają się na syntezie wyników przedklinicznych modeli zwierzęcych oraz klinicznych badań neuroobrazowych u ludzi. Chociaż modele zwierzęce pozwalają na precyzyjną, inwazyjną analizę poszczególnych mikroskopowych obwodów i receptorów, żaden model laboratoryjny nie odzwierciedla w pełni złożoności ludzkiego doświadczenia psychospołecznego, norm kulturowych czy wielowymiarowego kontekstu środowiskowego. Ponadto sam konstrukt głodu substancji (craving) w badaniach z udziałem ludzi pozostaje trudny do standaryzowanego pomiaru i nie zawsze wykazuje prostą korelację z rzeczywistym wystąpieniem nawrotu. Nie jest również do końca poznane, w jakim stopniu i w jakim przedziale czasowym przewlekłe neuroadaptacje w korze przedczołowej i układzie nagrody mogą ulec całkowitej rekonwalescencji po zaprzestaniu zażywania substancji.
Galeria zdjęć
Źródło obrazu: cdn.ncbi.nlm.nih.gov, autor: nih.gov. Zobacz oryginalną publikację.
Źródło informacji: Neurobiology of addiction: a neurocircuitry analysis - PMC. Zobacz publikację oryginalną.
Twoja opinia
Pomóż nam ocenić jakość tego materiału.
Komentarze Czytelników
Brak komentarzy. Możesz być pierwszy.
Chcesz dodać coś od siebie?
Skomentuj artykuł
Komentarze są dostępne dla zalogowanych i zweryfikowanych Czytelników.